Oversigt
Fedtvæv er ikke en passiv energireserve, men et dynamisk organ, der lagrer og mobiliserer energi, isolerer kroppen, beskytter organer og kommunikerer med hjerne, lever, skeletmuskulatur, pancreas, immunsystem og hjerte. Det består af modne adipocytter, præadipocytter og andre progenitorceller samt endotelceller, fibroblaster og flere typer immunceller. Fedtvævets biologiske egenskaber varierer desuden mellem de forskellige anatomiske depoter [1,2].
Den metaboliske risiko bestemmes derfor ikke kun af den samlede fedtmasse. Mindst lige så vigtigt er:
- hvor fedtet lagres
- om fedtvævet ekspanderer gennem flere eller større adipocytter
- om karforsyning og ekstracellulær matrix kan tilpasses ekspansionen
- graden af inflammation og fibrose
- fedtvævets insulinfølsomhed og evne til at hæmme lipolysen efter et måltid
- dets sekretion af adipokiner
- om lipider begynder at ophobes i organer som lever, skeletmuskulatur, pancreas og hjerte
Et velfungerende subkutant fedtvæv kan fungere som en metabolisk buffer. Når dets lagringskapacitet ikke slår til, øges strømmen af fedtsyrer til visceralt fedtvæv og til organer, som normalt ikke er tilpasset langvarig lipidlagring. Dette bidrager til insulinresistens, aterogen dyslipidæmi, metabolisk dysfunktion-associeret steatotisk leversygdom, type 2-diabetes og hjerte-kar-sygdom [1,2].
Hvidt, brunt og beige fedtvæv
Hvidt fedtvæv
Hvidt fedtvæv udgør størstedelen af fedtvævet hos voksne. Den modne hvide adipocyt indeholder sædvanligvis en stor lipidvakuole, som optager hovedparten af cellen og presser kernen ud mod periferien. Triglycerider lagres efter måltider og kan under faste eller fysisk aktivitet hydrolyseres til glycerol og frie fedtsyrer.
Insulin stimulerer glukoseoptag og lipogenese og hæmmer lipolyse. Katekolaminer og natriuretiske peptider kan derimod stimulere lipolyse. I en rask adipocyt er disse processer nøje reguleret, så fedtvævet optager lipider, når energitilførslen er høj, og frigiver dem, når andre organer har brug for brændstof.
Hvidt fedtvæv har også mekaniske og termiske funktioner. Subkutant fedt begrænser varmetab, og fedt omkring blandt andet nyrer, øjne og led giver stødabsorption og støtte. Den vigtigste moderne erkendelse er dog, at hvidt fedtvæv fungerer som et endokrint og immunologisk organ og ikke blot som et lagersted.
Brunt fedtvæv
Brune adipocytter indeholder mange små lipiddråber, rigeligt med mitokondrier og et højt udtryk af afkoblingsproteinet UCP1. Når UCP1 aktiveres, kan protoner vende tilbage over mitokondriets indre membran uden at drive ATP-syntese. Energien fra substratoxidationen omdannes da til varme. Dette er grundlaget for ikke-rystende termogenese [3].
Aktiveringen styres først og fremmest af sympatisk noradrenalinfrigørelse ved kulde. Brunt fedtvæv optager og oxiderer da både fedtsyrer og glukose. Vævet har særlig betydning hos nyfødte, men findes også hos voksne, primært i dybe cervikale, supraklavikulære, paravertebrale og mediastinale regioner. Aktiviteten kan påvises med kuldestimuleret FDG-PET i forskningssammenhæng [4].
Mængden af aktivt brunt fedtvæv har tendens til at være lavere ved højere alder og større kropsfedtmasse. Kuldeakklimatisering kan øge aktiviteten og har i mindre humane studier forbedret glukoseomsætning og insulinfølsomhed. Den samlede mængde brunt fedtvæv hos voksne er dog begrænset, og dets bidrag til døgnets energiforbrug er sædvanligvis for lille til alene at give et klinisk betydningsfuldt vægttab [4,5].
Beige fedtvæv
Beige adipocytter optræder især i subkutant hvidt fedtvæv. I ustimuleret tilstand ligner de hvide adipocytter, men efter for eksempel langvarig kuldeeksponering kan de udvikle et højere mitokondrieindhold, UCP1-udtryk og termogen kapacitet. Processen kaldes ofte browning.
Klassiske brune og beige adipocytter overlapper funktionelt, men har delvis forskellig udviklingsmæssig oprindelse. Beige adipocytter kan dannes ved differentiering af specifikke progenitorceller og sandsynligvis også ved fænotypisk omdannelse af modne hvide adipocytter. Den relative betydning af disse mekanismer varierer mellem fedtdepoter og fysiologiske tilstande [4].
Browning er tydeligt metabolisk gunstig i flere dyremodeller, men overførslen til behandling af mennesker er vanskelig. Adrenerg stimulation kan aktivere termogent fedtvæv, men kan samtidig øge puls og blodtryk. Der findes endnu ingen etableret behandling, hvor aktivering af brunt eller beige fedtvæv anvendes som selvstændig metode mod fedme [5].
| Egenskab | Hvidt fedtvæv | Brunt fedtvæv | Beige fedtvæv |
|---|---|---|---|
| Hovedfunktion | Energilagring og endokrin signalering | Varmeproduktion | Inducerbar varmeproduktion |
| Lipiddråber | Sædvanligvis én stor | Flere små | Flere små efter aktivering |
| Mitokondrier | Relativt få | Mange | Øges ved aktivering |
| UCP1 | Lavt eller mangler | Højt | Inducerbart |
| Typisk lokalisation | Subkutant og visceralt | Cervikalt, supraklavikulært og paravertebralt | Primært i subkutant hvidt fedtvæv |
| Klinisk betydning | Central for metabolisk homeostase og dysfunktion | Bidrager til kuldetermogenese | Potentielt behandlingsmål, endnu ikke etableret |
Adipocyttens hypertrofi og hyperplasi
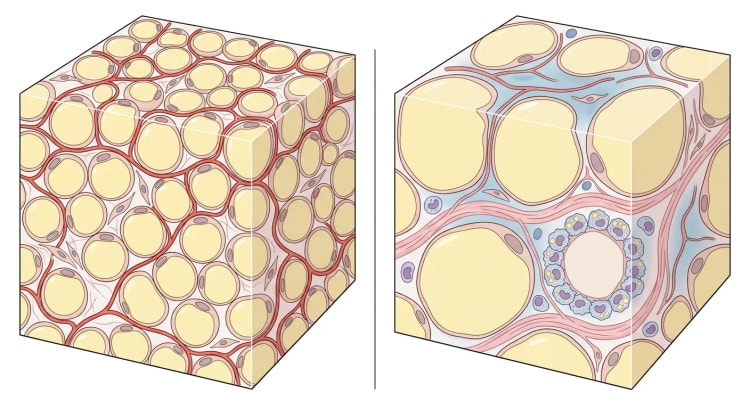
Fedtvæv kan ekspandere på to principielt forskellige måder. Hypertrofi betyder, at eksisterende adipocytter bliver større. Hyperplasi betyder, at nye adipocytter dannes ved rekruttering og differentiering af progenitorceller.
Begge processer forekommer ved vægtøgning, men deres relative betydning varierer mellem individer og depoter. Ved et begrænset energioverskud lagrer de eksisterende adipocytter flere triglycerider. Hvis vævet har god adipogen kapacitet, kan der dannes nye, små og insulinfølsomme adipocytter. Lipidbelastningen fordeles da på flere celler. Dette betragtes som en mere gunstig ekspansion end udtalt hypertrofi [2,6].
Adipogenesen reguleres af et netværk af transkriptionsfaktorer, hvor PPAR-gamma og C/EBP-alfa har centrale roller. Progenitorcellerne skal først determineres til adipocytlinjen og derefter gennemgå terminal differentiering. Den færdige adipocyt udvikler blandt andet insulinfølsomhed, glukosetransportører, lipogene enzymer og evne til at secernere adipokiner. Progenitorcellernes egenskaber er forskellige i subkutant, visceralt og organspecifikt fedtvæv [7].
Hypertrofe adipocytter har ofte:
- dårligere insulinfølsomhed
- højere basal lipolyse
- dårligere hæmning af lipolysen efter måltider
- større frigivelse af frie fedtsyrer
- lavere adiponektinproduktion
- øget sekretion af kemokiner og proinflammatoriske mediatorer
- større risiko for hypoksi, cellulær stress og celledød
Store adipocytter er således ikke blot større energilagre, men har en ændret biologisk fænotype. Hypertrofi er særlig ugunstig, når angiogenese, innervation og ombygning af den ekstracellulære matrix ikke holder trit med ekspansionen.
Hyperplasi er ikke altid uproblematisk. En stor samlet fedtmasse kan medføre mekanisk morbiditet og langsigtet metabolisk risiko, selv om adipocytterne er relativt velfungerende. På vævsniveau er en ekspansion med mange mindre adipocytter dog sædvanligvis forbundet med bedre insulinvirkning og mindre ektopisk fedtaflejring end den samme fedtmasse fordelt på få, meget store adipocytter [2,6].
Fedtvævet som endokrint organ
Fedtvævet secernerer hormoner, cytokiner, kemokiner, vækstfaktorer, vasoaktive stoffer, lipider, ekstracellulære vesikler og mikro-RNA. Disse signaler virker lokalt i fedtvævet, på tilstødende organer eller systemisk via kredsløbet. Fællesbetegnelsen adipokiner bruges ofte, selv om mange af stofferne også dannes i andre celletyper [8].
Fedtvævets sekretoriske funktion påvirker blandt andet:
- appetit og energibalance
- insulinsekretion og insulinfølsomhed
- leverens glukoseproduktion og lipidomsætning
- musklernes glukoseoptag
- inflammation og immunfunktion
- vaskulær tonus og endotel
- blodtryk
- hæmostase og fibrinolyse
- reproduktiv funktion
- knogleomsætning
Sekretionsmønsteret afhænger af fedtdepot, adipocytstørrelse, kønshormoner, energibalance, iltning og inflammationsgrad. Ikke alle adipokiner stammer fra selve adipocytterne. Ved fedme kan en betydelig del af for eksempel tumornekrosefaktor alfa, interleukin 6 og flere kemokiner produceres af makrofager og andre celler i fedtvævets stromale vaskulære fraktion.
Dysfunktionelt fedtvæv er ofte kendetegnet ved nedsat sekretion af insulinsensibiliserende signaler, for eksempel adiponektin og adipsin, samtidig med at resistin, retinolbindende protein 4 og flere inflammatoriske mediatorer øges. Dette ændrer kommunikationen med lever, pancreas, hjerte og andre målorganer [9].
Adipokiner: leptin, adiponektin og resistin
Leptin
Leptin produceres hovedsageligt i hvide adipocytter, og de cirkulerende niveauer afspejler groft sagt kroppens energilagre. Hormonet virker i hypothalamus og mindsker sult, samtidig med at det signalerer, at energitilførslen er tilstrækkelig til blandt andet reproduktion og normal neuroendokrin funktion.
Ved medfødt leptinmangel fører hormonmanglen til udtalt hyperfagi og svær fedme. Ved almindelig fedme er leptinniveauerne derimod oftest høje. Alligevel udebliver den forventede appetitdæmpning, hvilket plejer at blive beskrevet som leptinresistens. Mulige mekanismer er nedsat transport over blod-hjerne-barrieren og forstyrret signalering i leptinfølsomme neuroner.
Leptin har også virkninger på immunsystem, sympatikus, trombocytter, endotel og karvæg. Høje leptinniveauer er blevet associeret med inflammation, hypertension og aterosklerose, men sammenhængene påvirkes stærkt af samtidig fedtmasse og insulinresistens. Leptin bør derfor ikke tolkes som et isoleret mål for kardiovaskulær risiko [10,11].
Adiponektin
Adiponektin dannes først og fremmest i adipocytter, men adskiller sig fra leptin ved, at de cirkulerende niveauer ofte falder ved visceral fedme og adipocytdysfunktion. Hormonet fremmer fedtsyreoxidation og er forbundet med bedre insulinvirkning, antiinflammatoriske effekter og beskyttende virkning i karvæggen.
Lave adiponektinniveauer er associeret med insulinresistens, type 2-diabetes, steatotisk leversygdom og hjerte-kar-sygdom. Sammenhængene er dog ikke enkle. Ved visse fremskredne sygdomstilstande, især hjertesvigt og nyresvigt, kan der forekomme høje niveauer, som afspejler ændret elimination, katabolisme eller kompensatorisk signalering.
Adiponektin er biologisk interessant, men anvendes ikke rutinemæssigt som diagnostisk prøve ved fedme eller metabolisk sygdom.
Resistin
Hos forsøgsdyr produceres resistin i vid udstrækning af adipocytter og er blevet forbundet med insulinresistens. Hos mennesker stammer en betydelig del i stedet fra monocytter og makrofager. Resistin er associeret med inflammation, endotelpåvirkning og aterosklerotisk sygdom, men dets selvstændige betydning for human insulinresistens er mindre klar end for leptin og adiponektin [9,11].
Flere signalmolekyler
Fedtvævet producerer også blandt andet adipsin, chemerin, omentin, visfatin, apelin, fibroblastvækstfaktor 21 og retinolbindende protein 4. Nogle signaler er overvejende beskyttende, andre overvejende skadelige, men mange har kontekstafhængige virkninger. Inddelingen i gode og dårlige adipokiner er derfor en forenkling.
Subkutant og visceralt fedt
Anatomiske og funktionelle forskelle
Subkutant fedtvæv ligger mellem hud og fascie og udgør sædvanligvis kroppens største fedtdepot. Visceralt fedtvæv ligger inde i bughulen, blandt andet i omentet og mesenteriet. Retroperitonealt fedt regnes undertiden separat, men indgår ofte i bredere mål for intraabdominalt fedt.
Subkutant fedt er heterogent. Det subkutane abdominale fedt adskiller sig fra det gluteofemorale fedt på lår og balder. Gluteofemoralt fedtvæv har god kapacitet til at optage og langsigtet tilbageholde fedtsyrer. Det kan dermed fungere som en metabolisk buffer, der begrænser lipidstrømmen til lever og andre organer [1].
Viscerale adipocytter har i gennemsnit højere lipolytisk aktivitet og er mindre følsomme over for insulins antilipolytiske effekt. Mesenteriale fedtsyrer og glycerol kan nå leveren via portakredsløbet. Dette kan bidrage til leverens triglyceriddannelse, glukoseproduktion og produktion af VLDL [12].
Visceralt fedtvæv indeholder ofte flere immunceller og har et mere proinflammatorisk sekretionsmønster end gluteofemoralt subkutant fedtvæv. Den metaboliske risiko afspejler samtidig en større systemfejl: en stor visceral fedtmængde falder ofte sammen med begrænset subkutan ekspansionsevne, leversteatose og anden ektopisk fedtaflejring [12,13].
Køn, alder og hormoner
Før menopausen lagrer kvinder i gennemsnit en større andel af fedtet subkutant, især gluteofemoralt, mens mænd oftere har en højere andel visceralt fedt. Østrogensignalering bidrager til denne forskel. Efter menopausen øges den relative viscerale fedtaflejring, og den metaboliske risikoprofil ændres [14,15].
Aldring, fysisk inaktivitet, søvnmangel, genetisk prædisposition og hormonelle forandringer påvirker også fordelingen. BMI kan derfor ikke alene forudsige mængden af visceralt fedt.
Klinisk betydning
Visceral og ektopisk fedtaflejring er stærkere forbundet med insulinresistens og kardiometabolisk sygdom end subkutant fedt på lår og balder. Personer med samme BMI kan have meget forskellig metabolisk risiko. Selv en person med normalt BMI kan have en ugunstig kombination af lav muskelmasse, meget visceralt fedt og leversteatose. Omvendt kan en person med fedme have en stor subkutan fedtmasse, men forholdsvis lidt visceral og ektopisk fedtaflejring [1,13].
Taljeomkreds giver mere information om central fedtophobning end BMI alene, men kan ikke skelne subkutant abdominalt fedt fra visceralt fedt. CT- og MR-scanning kan kvantificere depoterne betydeligt bedre, men anvendes ikke rutinemæssigt alene til metabolisk risikovurdering.
Inflammation i fedtvævet
Rask fedtvæv indeholder immunceller, som bidrager til vævsvedligeholdelse, ombygning og fjernelse af døde celler. Inflammation er derfor ikke i sig selv patologisk. Kortvarig og reguleret inflammation er blandt andet nødvendig ved angiogenese og ekspansion af fedtvævet. Problemet opstår, når processen bliver kronisk [16].
Hypertrofe adipocytter kan udvikle relativ hypoksi, når karforsyningen ikke vokser i takt med cellernes størrelse. Mekanisk stress, stress i det endoplasmatiske reticulum, oxidativt stress, frie fedtsyrer og celledød bidrager til frigivelse af kemokiner. Monocytter rekrutteres fra kredsløbet og differentierer til makrofager.
Makrofager ophobes ofte omkring døde eller svært beskadigede adipocytter og danner kronelignende strukturer. De optager lipider og cellerester og producerer blandt andet interleukin 1 beta, interleukin 6, tumornekrosefaktor alfa og CCL2. Disse mediatorer kan forstærke lipolysen, forringe insulinvirkningen og rekruttere yderligere immunceller [16,17].
Den klassiske inddeling i antiinflammatoriske M2-makrofager og proinflammatoriske M1-makrofager er pædagogisk anvendelig, men biologisk forenklet. Enkeltcelleanalyser viser flere subpopulationer, herunder lipidassocierede makrofager med forskellige funktioner. Nogle kan begrænse vævsskade ved at håndtere lipider, mens andre driver inflammation og fibrose [17].
Også T-celler, B-celler, neutrofiler, mastceller og medfødte lymfoide celler deltager. I metabolisk rask fedtvæv er regulatoriske T-celler og flere vævsbevarende immunceller relativt fremtrædende. Ved fedme forskydes balancen ofte mod et mere inflammatorisk miljø.
Inflammatoriske kinaser kan hæmme insulins signalveje gennem ændret fosforylering af insulinreceptorsubstrat. Bioaktive lipider som diacylglyceroler og ceramider kan samtidig påvirke intracellulære signalveje i fedtvæv, lever og muskel. Fedtvævsinflammation og lipidoverskud forstærker derfor hinanden [18,19].
Humane studier viser tydelige sammenhænge mellem fedtvævsinflammation og insulinresistens, men den fulde årsagskæde er sværere at fastslå hos mennesker end i dyremodeller. Inflammation er en vigtig del af adipocytdysfunktionen, men ikke den eneste forklaring på metabolisk sygdom.
Fedtvævets ekspansionsevne og adipocytdysfunktion
Ekspansionshypotesen tager udgangspunkt i, at subkutant fedtvæv har en individuel, begrænset kapacitet til at lagre triglycerider på en sikker måde. Kapaciteten påvirkes af genetik, alder, kønshormoner, tidligere vægtudvikling, adipogenese, blodforsyning, ekstracellulær matrix og graden af inflammation [2,6].
Når ekspansionen fungerer godt, sker følgende:
- Progenitorceller rekrutteres og danner nye adipocytter.
- Kapillærnettet vokser i takt med vævet.
- Den ekstracellulære matrix omorganiseres uden udtalt fibrose.
- Adipocytterne bevarer deres insulinfølsomhed.
- Lipolysen hæmmes effektivt efter måltider.
- Fedtsyrer lagres som relativt inerte triglycerider.
- Adipokinprofilen forbliver forholdsvis gunstig.
Når kapaciteten overskrides, dominerer i stedet hypertrofi, hypoksi, fibrose, inflammation og insulinresistens. Insulin kan da ikke hæmme lipolysen tilstrækkeligt, hvilket øger tilførslen af frie fedtsyrer og glycerol til leveren. Samtidig bliver fedtvævet dårligere til at håndtere cirkulerende triglyceridrige lipoproteiner.
Den ekstracellulære matrix har en dobbeltrolle. En vis ombygning er nødvendig for ekspansion, men udtalt kollagenaflejring gør vævet stift og begrænser adipocytternes mulighed for at ekspandere. Fibrose kan dermed fremme cellestress og lipid-spillover, selv om den samlede fedtmasse ikke er ekstrem.
Begrebet personlig fedttærskel beskriver, at forskellige individer udvikler ektopisk fedtaflejring og metabolisk dekompensation ved forskellig samlet fedtmasse. Personer med lille subkutan lagringskapacitet kan derfor udvikle type 2-diabetes ved et relativt lavt BMI, mens andre kan lagre betydeligt mere fedt subkutant, før glukose- og lipidmetabolismen påvirkes alvorligt [6].
Fænotypen metabolisk sund fedme er associeret med mindre leverfedt og visceralt fedt, bedre subkutan ekspansionsevne, mindre inflammation og bedre kondition end metabolisk syg fedme. Den bør dog ikke betragtes som permanent eller risikofri. En stor andel udvikler med tiden metaboliske afvigelser, og risikoen er højere end hos metabolisk raske personer uden fedme [30].
Ektopisk fedtaflejring i lever, muskel og pancreas
Ektopisk fedtaflejring betyder, at lipider ophobes i eller omkring væv, som ikke er specialiseret til langvarig energilagring. Triglyceridlageret er ikke altid direkte toksisk. Det kan initialt beskytte cellen ved at binde fedtsyrer. Skaden er snarere forbundet med kronisk substratoverskud, utilstrækkelig oxidation, inflammation og dannelse af reaktive lipidintermediater.
Lever
Leverfedt tilføres ad flere veje:
- frie fedtsyrer fra fedtvævets lipolyse
- kostlipider
- hepatisk de novo-lipogenese fra primært kulhydratsubstrater
- mangelfuld eksport eller oxidation af triglycerider
Når leveren bliver insulinresistent, kan insulins hæmning af glukoseproduktionen svækkes, samtidig med at den lipogene signalering delvis bevares. Resultatet kan blive en kombination af øget glukoseproduktion, hyperinsulinæmi, fortsat lipogenese og øget VLDL-sekretion [19].
Steatotisk leversygdom er tæt forbundet med insulinresistens og type 2-diabetes. Sammenhængen er tovejs. Diabetes øger risikoen for progressiv leversygdom, mens leversteatose og hepatisk insulinresistens bidrager til hyperglykæmi og aterogen dyslipidæmi [20].
Mængden af triglycerid afgør ikke alene, om steatosen udvikler sig til inflammation og fibrose. Genetiske faktorer, lipidernes sammensætning, oxidativt stress, mitokondriefunktion, immunrespons og samtidig metabolisk sygdom påvirker risikoen. Leverfedt kan forekomme også uden fedme, især ved lille subkutan lagringskapacitet eller genetisk prædisposition.
Skeletmuskulatur
Fedt i skeletmuskulatur kan ligge mellem muskelgrupper, mellem muskelfibre eller som små lipiddråber inde i muskelfibrene. Disse depoter har forskellig biologisk betydning. Intermuskulært fedtvæv ligner andet hvidt fedtvæv og kan bidrage til lokal inflammation. Intramyocellulære triglycerider er derimod et normalt og hurtigt tilgængeligt brændstof ved fysisk aktivitet.
Et højt indhold af intramyocellulære lipider er ofte associeret med insulinresistens, men sammenhængen er ikke lineær. Udholdenhedsatleter kan have store intramyocellulære triglyceridlagre og samtidig meget god insulinfølsomhed. Dette kaldes atletparadokset [21].
Forskellen ligger blandt andet i lipidomsætningen. Trænede muskler har flere mitokondrier, høj oxidativ kapacitet og små lipiddråber tæt på mitokondrierne. Lipiderne omsættes hurtigt under arbejde. Ved insulinresistens ses oftere større og mere ugunstigt placerede lipiddråber samt ophobning af diacylglyceroler, ceramider og andre intermediater, som forstyrrer insulinsignaleringen.
Myosteatose er et bredere billeddiagnostisk begreb for øget fedtinfiltration og nedsat muskeldensitet. Den er associeret med dårligere muskelstyrke, mobilitet og prognose ved flere kroniske sygdomme, men må ikke sidestilles med sarkopeni. Sarkopeni kræver nedsat muskelstyrke og sædvanligvis reduceret muskelmasse eller muskelkvalitet [22].
Pancreas
Fedt kan ophobes både mellem pancreaslobuli og inde i parenkymets celler. Mængden af pancreasfedt er associeret med fedme, visceral fedtophobning, insulinresistens og type 2-diabetes. Mulige skadesmekanismer er lokal inflammation, oxidativt stress, påvirkning af mikrocirkulationen og eksponering af betacellerne for toksiske lipidintermediater.
Det er dog sværere at fastslå en direkte årsagssammenhæng mellem pancreasfedt og betacellesvigt end mellem leverfedt og hepatisk insulinresistens. Pancreasfedt er heterogent fordelt, og målemetoderne varierer. Det kan derfor både være en markør for generel ektopisk fedtaflejring og en lokal medvirkende faktor til forringet insulinsekretion [9].
Er ektopisk fedt reversibelt?
Ektopisk fedt er dynamisk. Vægttab gennem energiunderskud mindsker sædvanligvis leverfedtet relativt hurtigt. Fysisk aktivitet kan forbedre insulinvirkningen og mindske leverfedtet selv ved begrænset vægtændring. I en systematisk oversigt over livsstilsinterventioner faldt det ektopiske fedt i lever og hjerte, mens resultaterne for pancreas og intramyocellulære lipider var mere usikre. Kombinationen af kostomlægning og motion gav større effekt end motion alene [23].
I skeletmuskulatur er behandlingsmålet ikke nødvendigvis at eliminere alle intramyocellulære triglycerider. Udholdenhedstræning kan i stedet omorganisere lipiddråberne, øge mitokondriernes kapacitet og forbedre lipidomsætningen trods uændret eller endda øget triglyceridmængde [21].
Epikardielt og perivaskulært fedt
Definitioner
Epikardielt fedt ligger mellem myokardiet og det viscerale perikardium. Det har direkte kontakt med hjertemusklen og koronararterierne uden adskillende fascie og forsynes af koronarkredsløbet. Parakardielt fedt ligger uden for det parietale perikardium. Perivaskulært fedtvæv omgiver arterier og arterioler i flere organer [24,25].
Intramyokardielt fedt, altså lipiddråber inde i kardiomyocytterne, er et andet depot og må ikke forveksles med epikardielt fedtvæv.
Fysiologiske funktioner
Rask epikardielt og perivaskulært fedtvæv kan:
- give mekanisk støtte
- fungere som lokal energireserve
- buffre høje fedtsyrekoncentrationer
- secernere adiponektin og karrelakserende faktorer
- modulere vaskulær tonus og lokal inflammation
Da depoterne ligger direkte op ad myokardiet og karvæggen, kan deres signalmolekyler nå målvævet ved diffusion eller via karvæggens vasa vasorum.
Dysfunktion
Når depoterne ekspanderer, kan de blive hypoksiske og inflammerede. Sekretionen forskydes da fra adiponektin og karrelakserende mediatorer mod blandt andet interleukin 6, tumornekrosefaktor alfa, resistin og oxidative signaler. Dette kan bidrage til endoteldysfunktion, vasokonstriktion, proliferation af glatte muskelceller og fibrotisk ombygning [25,26].
Øget epikardiel fedtvolumen er associeret med koronararteriesygdom og atrieflimren. Periatrielt fedtvæv kan tænkes at fremme lokal inflammation og atriefibrose. Den epikardielle fedtmængde samvarierer imidlertid stærkt med visceral abdominal fedme, og store dele af evidensen er observationel. Det er derfor ikke altid muligt at afgøre, hvor stor en del af risikoen der skyldes lokale forhold, og hvor stor en del der afspejler generel metabolisk dysfunktion [25,27].
Epikardielt fedt kan måles med ekkokardiografi, CT- eller MR-scanning. Metoderne måler delvis forskellige egenskaber, og der mangler standardiserede kliniske grænseværdier. Målingen anvendes derfor primært som supplerende information og i forskning, ikke som et selvstændigt diagnostisk kriterium.
Lipodystrofi som spejlbillede
Lipodystrofi viser tydeligt, at metabolisk sygdom ikke kræver en stor samlet fedtmasse. Tilstandene er kendetegnet ved generaliseret eller partiel mangel på funktionelt fedtvæv. De kan være medfødte eller erhvervede.
Når der mangler sikre subkutane lagre, kan triglycerider ikke lagres normalt. Lipider omdirigeres da til lever, muskel og andre organer. Følgen kan blive:
- svær insulinresistens
- diabetes
- udtalt hypertriglyceridæmi
- steatotisk leversygdom og steatohepatitis
- polycystisk ovariesyndrom
- kardiomyopati og hjerte-kar-sygdom
Leptinniveauerne er særlig lave ved generaliseret lipodystrofi, hvilket bidrager til hyperfagi og forværret energioverskud. Lipodystrofi kan derfor betragtes som et biologisk spejlbillede af fedme: i det ene tilfælde findes der meget fedtvæv, som ikke længere kan lagre energi på en sikker måde, i det andet findes der for lidt funktionelt fedtvæv fra starten [28].
Diagnosen er klinisk og bygger på mønsteret af fedttab, anamnese, objektiv undersøgelse og metabolisk profil. Fotografier af kroppen fra tidligere alderstrin, hudfoldsmåling, DXA eller MR-scanning kan give støtte. Leptinniveauerne overlapper mellem forskellige grupper og kan ikke alene bekræfte eller udelukke diagnosen. Genetisk analyse er værdifuld ved mistanke om en arvelig form [28,29].
Patienter med de fleste former for lipodystrofi bør følges for diabetes, dyslipidæmi samt lever-, nyre- og hjertesygdom. Metreleptin kan forbedre hyperfagi, glukosekontrol, triglycerider og leversteatose ved hypoleptinæmisk generaliseret lipodystrofi og hos udvalgte patienter med partiel lipodystrofi [28]. Tilgængelighed og godkendte indikationer varierer mellem landene, og ordination i Sverige skal vurderes efter gældende svenske nationale regler.
Metabolisk sund fedme og normalvægtig metabolisk sygdom
Begrebet metabolisk sund fedme beskriver personer med fedme, som på et givet tidspunkt ikke har diabetes, hypertension eller udtalt dyslipidæmi. Gruppen har ofte mindre leverfedt og visceralt fedtvæv, mere subkutant fedt på benene, mindre fedtvævsinflammation og bedre kondition end personer med metabolisk syg fedme [30].
Fænotypen er imidlertid hverken ensartet defineret eller stabil. Mange går med stigende alder eller fortsat vægtøgning over til metabolisk syg fedme. Selv personer, som forbliver metabolisk raske, har højere risiko for visse fremtidige komplikationer end metabolisk raske personer uden fedme.
Den modsatte fænotype forekommer også: personer med normalt BMI, men meget visceralt fedt, leverfedt, lav muskelmasse og insulinresistens. Dette understreger, at kropsvægt ikke kan erstatte vurdering af blodtryk, glukose, lipider, taljeomkreds og organpåvirkning.
Vurdering af fedtfordeling og ektopisk fedt
Antropometri
BMI er enkelt og anvendeligt til populationsstudier, men skelner ikke fedtmasse fra muskelmasse og siger kun lidt om fedtfordelingen. Taljeomkreds supplerer BMI ved at indfange central fedtophobning, men kan ikke skelne visceralt fra subkutant abdominalt fedt.
Bioimpedans kan estimere den samlede fedtmasse, men påvirkes af væskestatus, nyligt fødeindtag, fysisk aktivitet og måleudstyr. Metoden er ikke tilstrækkelig til sikker kvantificering af visceralt eller ektopisk fedt [31].
Billeddiagnostik
| Metode | Styrker | Begrænsninger |
|---|---|---|
| Ultralyd | Tilgængeligt, billigt, ingen stråling | Operatørafhængigt, begrænset præcision, let leversteatose kan overses |
| DXA | God til samlet fedtmasse, fedt på benene og fedtfri masse | Begrænset adskillelse af specifikke organfedtdepoter |
| CT-scanning | God adskillelse af visceralt og subkutant fedt, kan vurdere muskeldensitet | Ioniserende stråling, protokolafhængige måleværdier |
| MR-scanning | Nøjagtig volumenbestemmelse, ingen ioniserende stråling | Omkostninger, tilgængelighed, krav om standardiseret analyse |
| MR-spektroskopi | Kan måle lipider i lever, muskel og myokardium | Primært forskningsmetode, lille prøvevolumen og avanceret analyse |
| MRI-PDFF | Kvantitativ og reproducerbar måling af organfedt, især leverfedt | Ressourcekrævende og ikke nødvendig til al rutinediagnostik |
MR-scanning har høj præcision for organfedt og fedtfordeling. CT-scanning kan give vigtig information, når undersøgelsen allerede udføres af anden årsag, men bør ikke bestilles alene til fedtmåling uden en klar klinisk problemstilling. Billeddiagnostiske fedtmål mangler desuden ofte ensartede kliniske grænseværdier [22,31].
Klinisk fortolkning
Det centrale budskab er, at fedtvæv både kan være beskyttende og sygdomsdrivende. En rask adipocyt binder energirige fedtsyrer i et relativt inert triglyceridlager og beskytter dermed lever, muskel, pancreas, kar og hjerte. Denne funktion kræver velfungerende adipogenese, karforsyning, insulinsignalering og vævsombygning.
Den metaboliske risiko øges, når:
- den subkutane lagringskapacitet er lille
- adipocytterne bliver kraftigt hypertrofe
- fedtvævet bliver hypoksisk, fibrotisk og inflammeret
- insulin ikke længere hæmmer lipolysen
- adipokinprofilen bliver ugunstig
- det viscerale og ektopiske fedt øges
- musklernes oxidative kapacitet er lav
Fedt det forkerte sted er derfor ofte farligere end den samme mængde fedt i et velfungerende subkutant depot. Det betyder ikke, at en stor samlet fedtmasse er ufarlig. Fedme kan også uden tydelig metabolisk dysfunktion forårsage mekaniske, respiratoriske, reproduktive og muskuloskeletale komplikationer. Fedtfordeling og fedtvævsfunktion forklarer først og fremmest, hvorfor risikoen varierer så meget mellem personer med lignende kropsvægt.
Kilder
- Neeland IJ, Poirier P, Després JP. Cardiovascular and Metabolic Heterogeneity of Obesity: Clinical Challenges and Implications for Management. Circulation 2018. PMID: 29581366
- Longo M et al. Adipose Tissue Dysfunction as Determinant of Obesity-Associated Metabolic Complications. International Journal of Molecular Sciences 2019. PMID: 31085992
- Cannon B, Nedergaard J. Brown adipose tissue: function and physiological significance. Physiological Reviews 2004. PMID: 14715917
- Kiefer FW. The significance of beige and brown fat in humans. Endocrine Connections 2017. PMID: 28465400
- Harb E et al. Brown adipose tissue and regulation of human body weight. Diabetes Metabolism Research and Reviews 2023. PMID: 36398906
- Cuthbertson DJ et al. What have human experimental overfeeding studies taught us about adipose tissue expansion and susceptibility to obesity and metabolic complications? International Journal of Obesity 2017. PMID: 28077863
- Favaretto F et al. Adipogenic progenitors in different organs: Pathophysiological implications. Reviews in Endocrine and Metabolic Disorders 2022. PMID: 34716543
- Rabe K et al. Adipokines and insulin resistance. Molecular Medicine 2008. PMID: 19009016
- Gilani A et al. Adipose Signals Regulating Distal Organ Health and Disease. Diabetes 2024. PMID: 38241508
- Landecho MF et al. Relevance of Leptin and Other Adipokines in Obesity-Associated Cardiovascular Risk. Nutrients 2019. PMID: 31694146
- Liu L et al. Adipokines, adiposity, and atherosclerosis. Cellular and Molecular Life Sciences 2022. PMID: 35503385
- Tchernof A, Després JP. Pathophysiology of human visceral obesity: an update. Physiological Reviews 2013. PMID: 23303913
- Piché ME, Tchernof A, Després JP. Obesity Phenotypes, Diabetes, and Cardiovascular Diseases. Circulation Research 2020. PMID: 32437302
- Tramunt B et al. Sex differences in metabolic regulation and diabetes susceptibility. Diabetologia 2020. PMID: 31754750
- Palmer BF, Clegg DJ. The sexual dimorphism of obesity. Molecular and Cellular Endocrinology 2015. PMID: 25578600
- Lee YS, Olefsky J. Chronic tissue inflammation and metabolic disease. Genes and Development 2021. PMID: 33649162
- Li X et al. Adipose tissue macrophages as potential targets for obesity and metabolic diseases. Frontiers in Immunology 2023. PMID: 37153549
- Kojta I, Chacińska M, Błachnio-Zabielska A. Obesity, Bioactive Lipids, and Adipose Tissue Inflammation in Insulin Resistance. Nutrients 2020. PMID: 32375231
- Samuel VT, Shulman GI. The pathogenesis of insulin resistance: integrating signaling pathways and substrate flux. Journal of Clinical Investigation 2016. PMID: 26727229
- Rhee EJ. Nonalcoholic Fatty Liver Disease and Diabetes: An Epidemiological Perspective. Endocrinology and Metabolism 2019. PMID: 31565874
- Gemmink A, Schrauwen P, Hesselink MKC. Exercising your fat metabolism into shape: a muscle-centred view. Diabetologia 2020. PMID: 32529413
- Garcia-Diez AI et al. Myosteatosis: diagnostic significance and assessment by imaging approaches. Quantitative Imaging in Medicine and Surgery 2024. PMID: 39544479
- Hens W et al. The Effect of Lifestyle Interventions on Excess Ectopic Fat Deposition Measured by Noninvasive Techniques in Overweight and Obese Adults: A Systematic Review and Meta-Analysis. Journal of Physical Activity and Health 2016. PMID: 26694194
- Lim S, Meigs JB. Links between ectopic fat and vascular disease in humans. Arteriosclerosis, Thrombosis, and Vascular Biology 2014. PMID: 25035342
- Iozzo P. Myocardial, perivascular, and epicardial fat. Diabetes Care 2011. PMID: 21525485
- Tanaka K, Sata M. Roles of Perivascular Adipose Tissue in the Pathogenesis of Atherosclerosis. Frontiers in Physiology 2018. PMID: 29487532
- Akoumianakis I, Antoniades C. The interplay between adipose tissue and the cardiovascular system: is fat always bad? Cardiovascular Research 2017. PMID: 28582523
- Brown RJ et al. The Diagnosis and Management of Lipodystrophy Syndromes: A Multi-Society Practice Guideline. Journal of Clinical Endocrinology and Metabolism 2016. PMID: 27710244
- Fourman LT et al. A rapid action plan to improve diagnosis and management of lipodystrophy syndromes. Frontiers in Endocrinology 2024. PMID: 38952397
- Blüher M. Metabolically Healthy Obesity. Endocrine Reviews 2020. PMID: 32128581
- Vilalta A et al. Adipose tissue measurement in clinical research for obesity, type 2 diabetes and NAFLD/NASH. Endocrinology, Diabetes and Metabolism 2022. PMID: 35388643